Результаты работы с Dengue-RdRp3-inhibitor complex (3-5)
Макромалекула представлена одноцепочечным полипептидом разделенным на два домена, длинной 636 амк. Полипетид — РНК-зависимая РНК полимераза 3.
Ход цепи продемонстрирован: синий конец — N, красный — С.
Биологическая единица состоит из одной цепи, как и асимметрическая — они не отличаются (далее единственную цепь буду называть «фермент», «полипептид», «белок», «RdRP»).
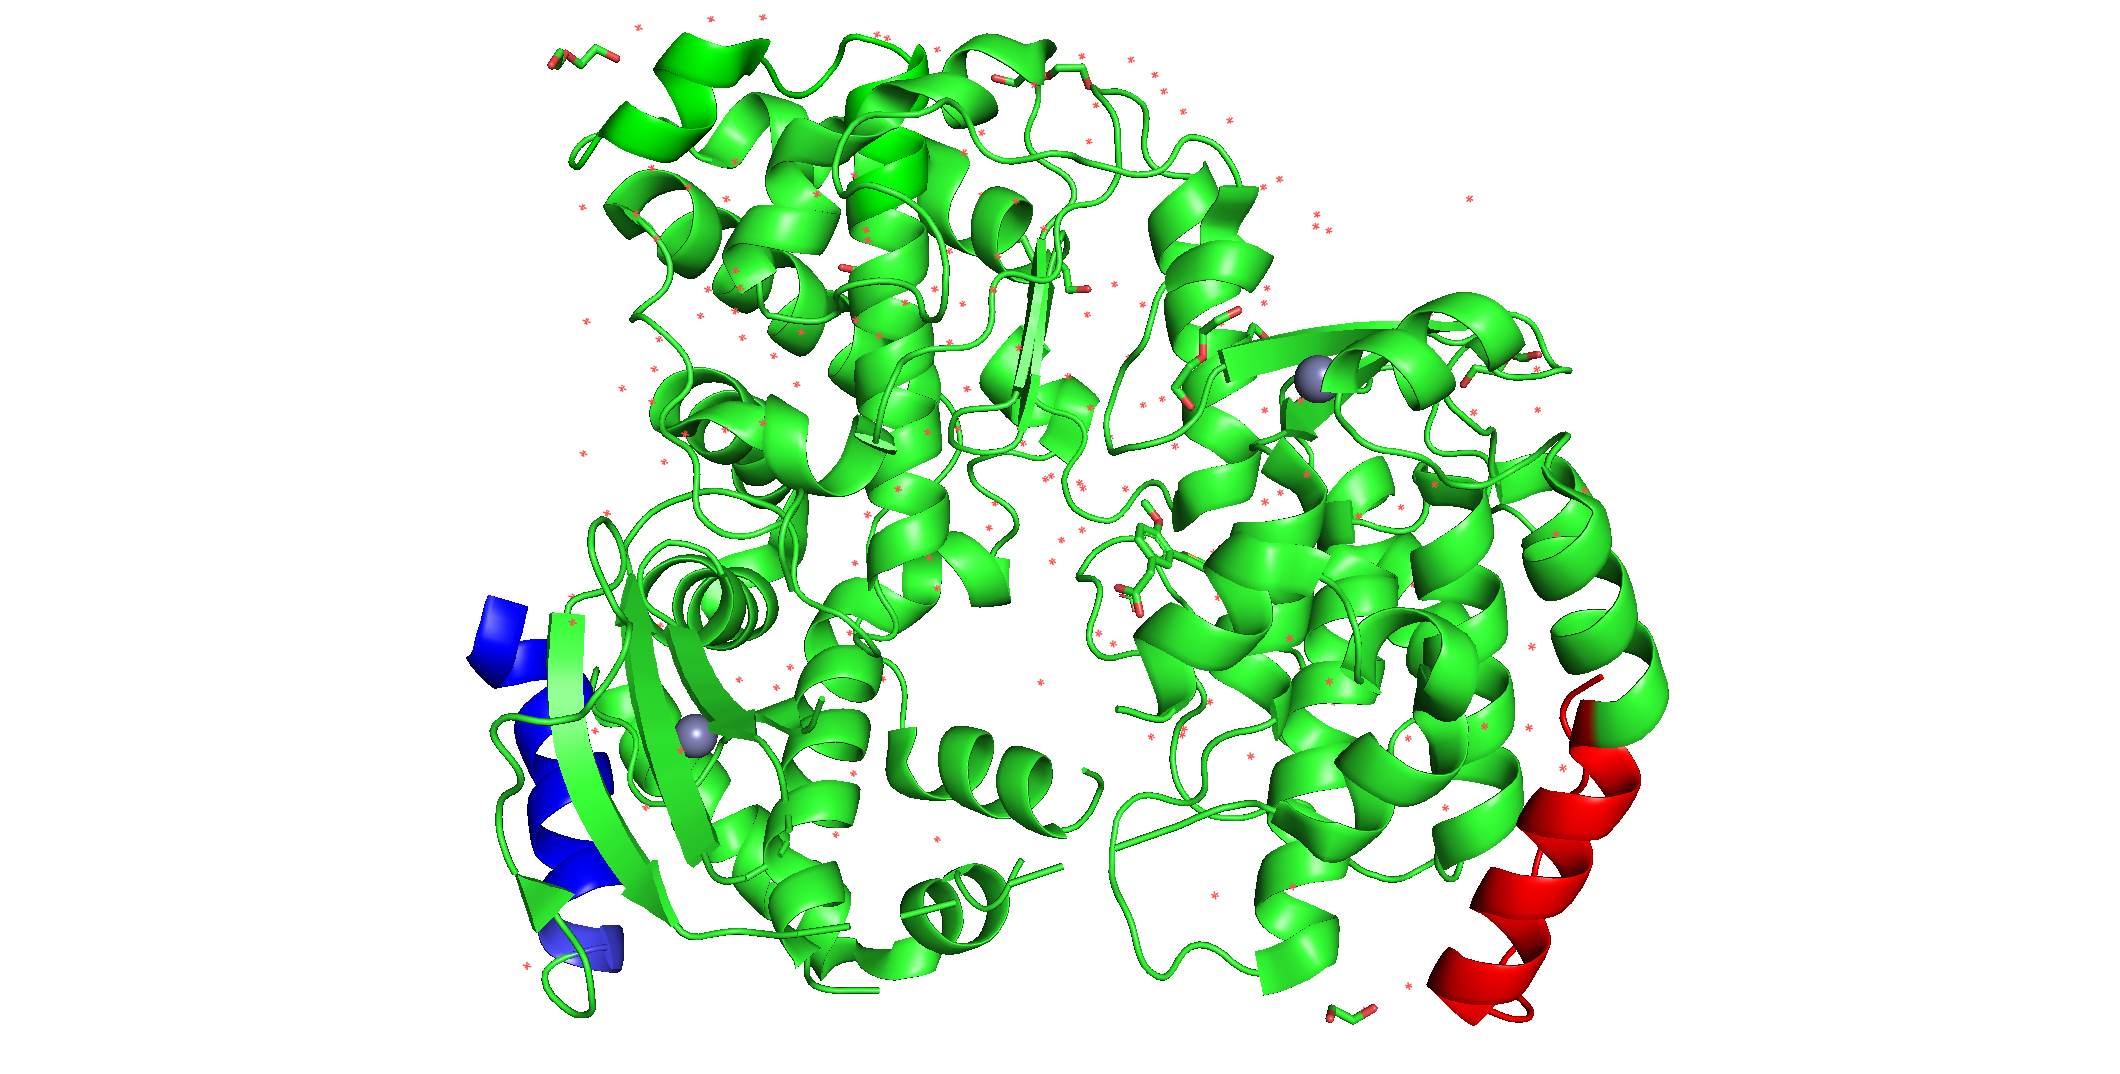
Рис. 1. Общая структура RdRP. Синим обозначен N-конец, красным - C-конец.
Единственная цепь этого полипептида принадлежит вирусу лихорадки Денге. Данный вирус относится к арбовирусам, семейству Flaviviridae. Геномы вирусов этой группы представлены одноцепочечной (+)РНК, обладающей на 5'-конце метилированный нуклеотид.
Наш белок выровнялся по последовательности Q6YMS4 (POLG_DEN3S), которая является большим геномным полипептидом длинной 3390 амк.
Наша RdRP находится ближе к C концу полипетида. Её функции:
- Репликация вирусной геномной (+)РНК и выполняет "кэппинг" геномов в цитоплазме.
- Ингибирует фосфорилирование TYK2 и STAT2 в организме хозяина, тем самым предотвращая активацию сигнального пути JAK-STAT, тем самым противодействует клеточному противовирусному ответу.
У последовательность RdRP относительно референсного участка POLG_DEN3S средствами PDB было обнаружено четыре мутации:
- Позиция 101 - замена Met на Leu.
- Позиция 107 - замена Ala на Val.
- Позиция 215 - замена Ala на Val.
- Позиция 338 - замена Leu на Val.
Модифицированных оснований обнаружено не было.
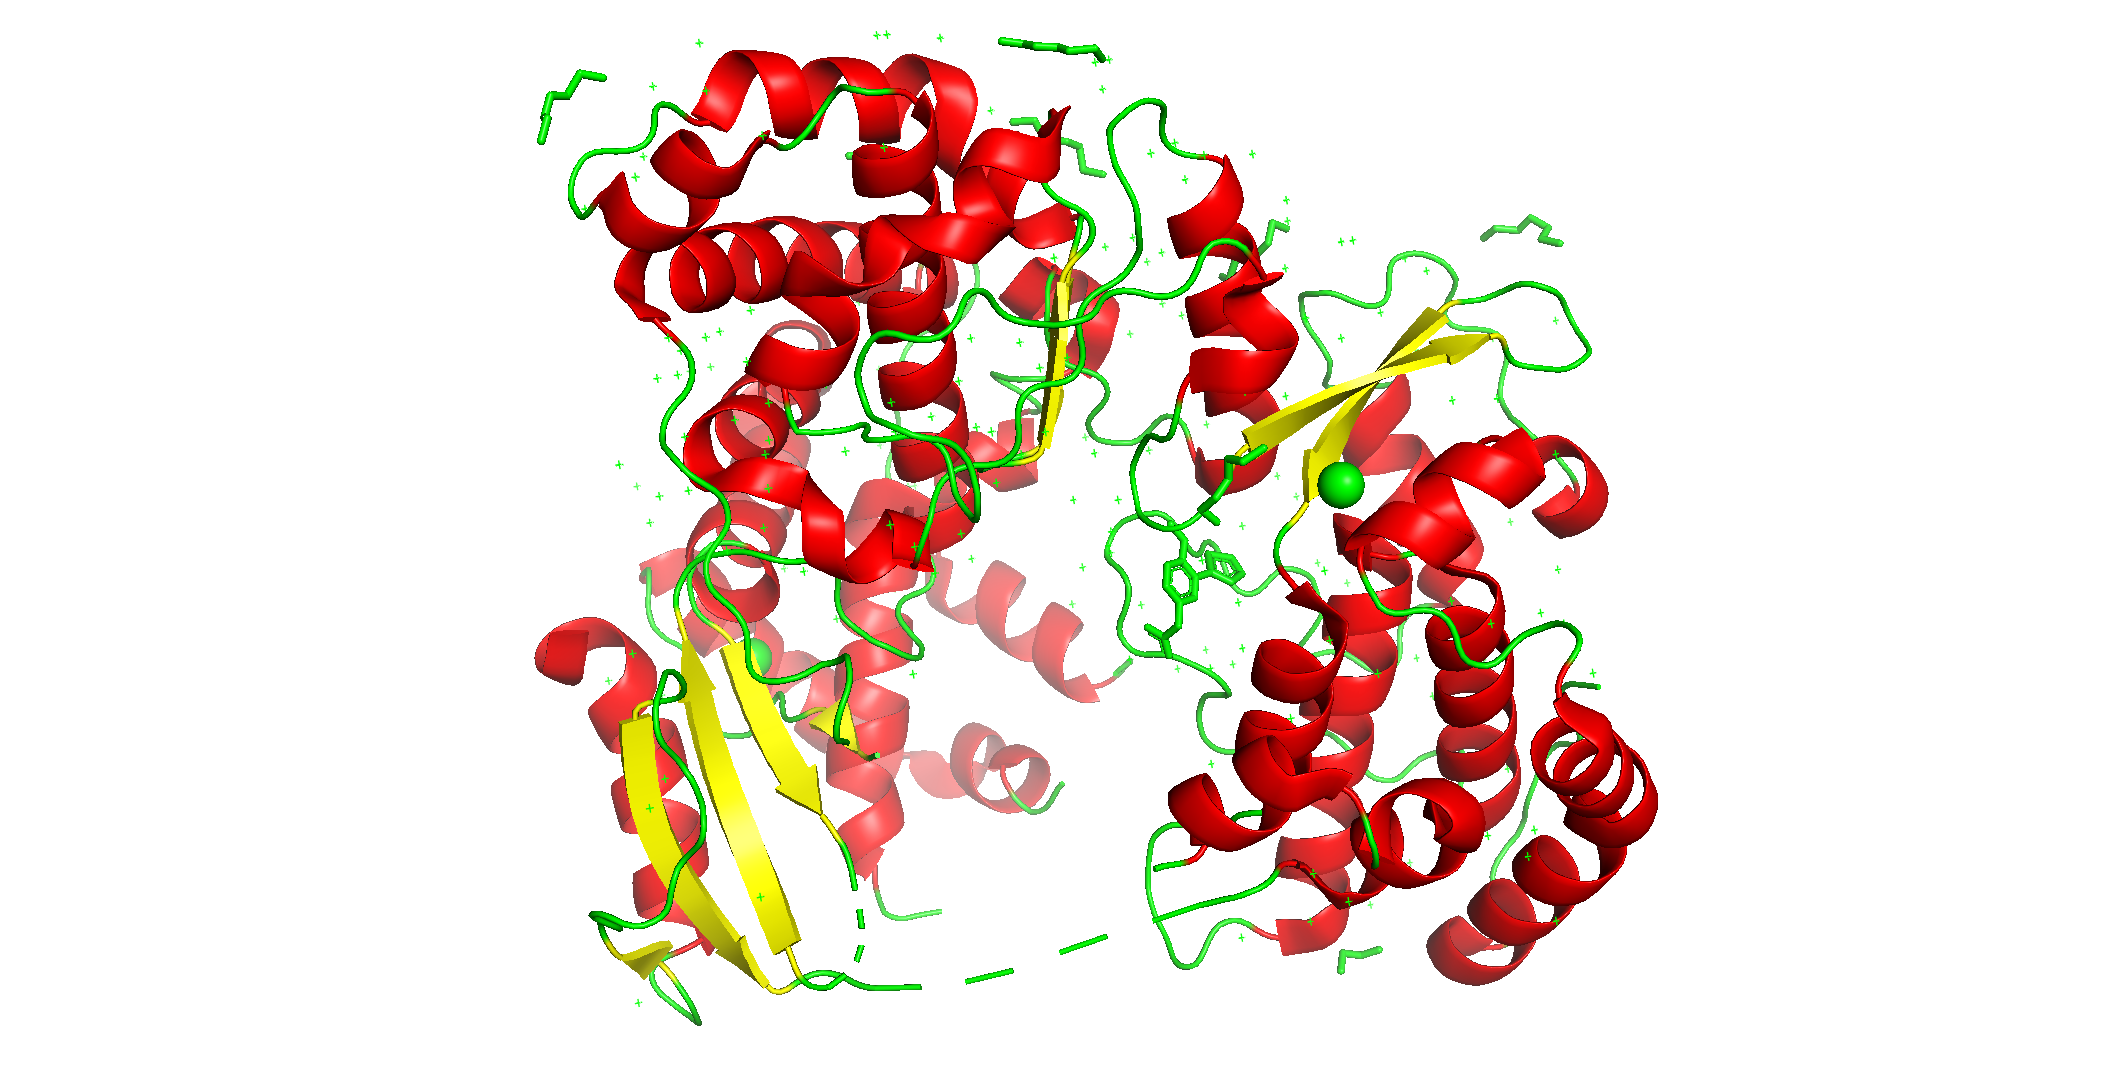
Рис. 2. Структура RdRP с выделенными элементами вторичной структуры. Красным цветом отмечены спирали, желтым - листы, зеленым - аминокислоты вне вторичной структур.
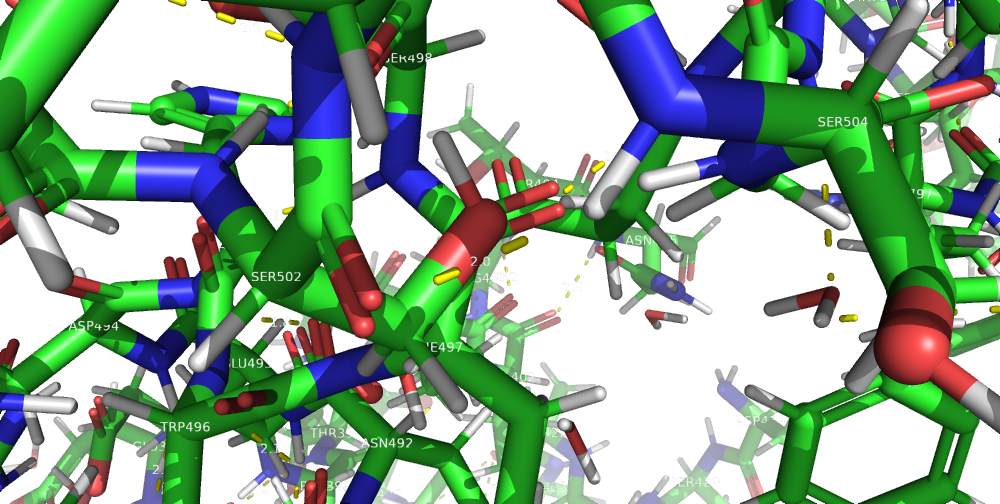
Рис. 1. Водородная связь атомов остова между SER504 и SER502
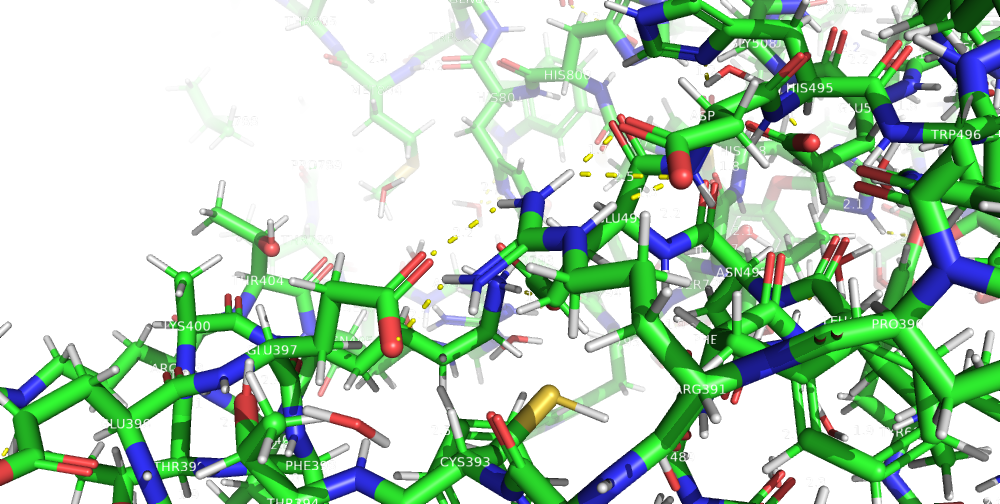
Рис. 2. Водородная связь атомов радикалов ARG391 и GLU397 (длина связи слишком небольшая для солевого мостика).
Рис. 3. Солевой мостик атомов радикалов ARG815 и GLU807.
Дисульфидных мостиков не было обнаружено. Любой из имеющихся CYS участвует во взаимодействиях электростатической природы.
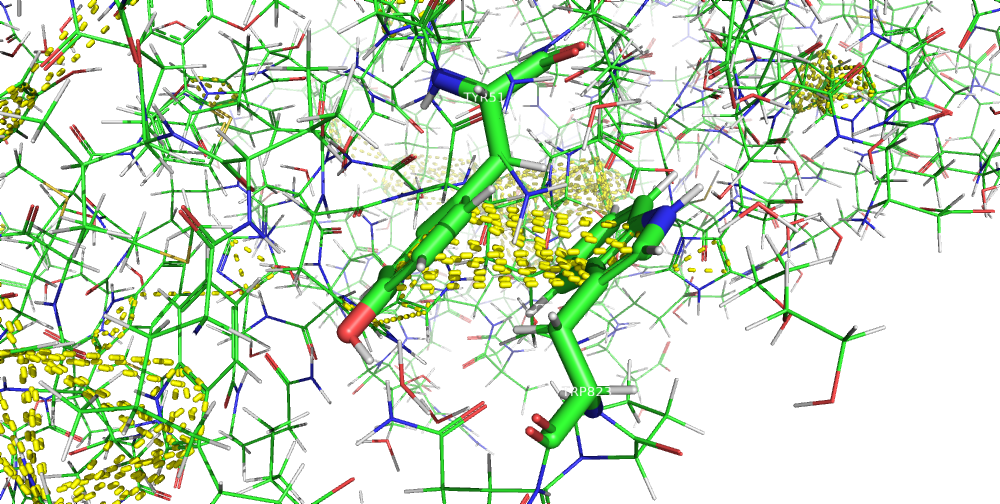
Рис. 4. Параллельный стэкинг между TYR516 и TRP823.
Классификационный номер нашего полипептида - 2.7.7.48, что соответсвует РНК-зависимой РНК полимеразе.
Катализирует направленное по матрице удлинение 3'-конца цепи РНК на один нуклеотид за раз. Кроме того, может инициировать цепочку de novo.
Катализируемая реакция:
a ribonucleoside 5'-triphosphate + RNA(n) <=> diphosphate + RNA(n+1)
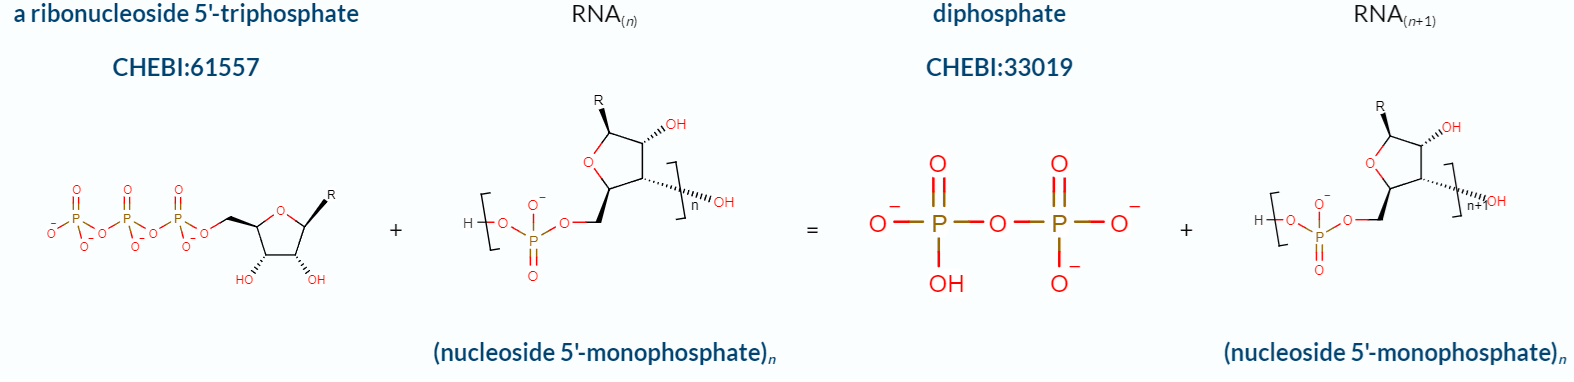
Рис. 1. Графическое представление катализируемой реакции.
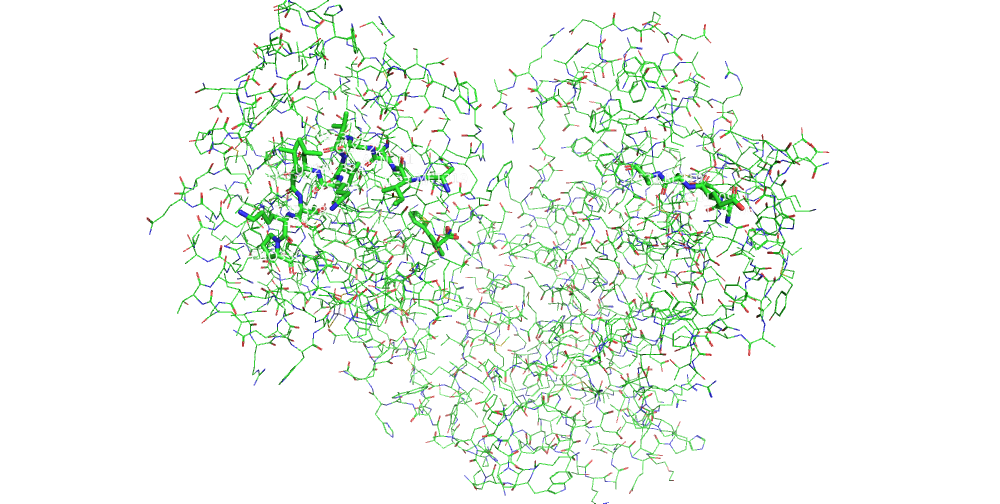
Рис. 1. На рисунке подписаны аминокислоты входящие в каталитический центр РНК-полимеразы. Аминокислоты формируют "пальцы", представлены с положительно заряженными радикалами. В силу единства знака заряда солевых мостиков не образуется, как и водородных связей.
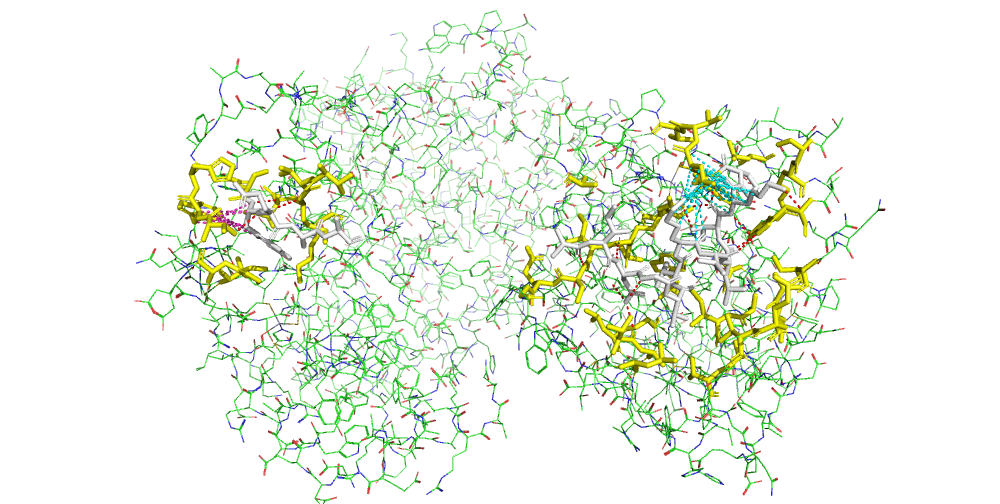
Рис. 2. Взаимодействия каталитического центра (выделено белым) и его окружения (выделено желтым). Представлены водородные связи (выделено красным), электростатические (циановые) (ASP332 и множество заряженных радикалов, таких как LYS325 и LYS329). Так же малиновым выделены то, что могло бы быть стэкинг взаимодействием по расстояниюно, но что по углу разворота аминокислот не подходит.
Рис. 3. На рисунке подписаны аминокислоты входящие в каталитический центр РНК-полимеразы и выделен 5V5.
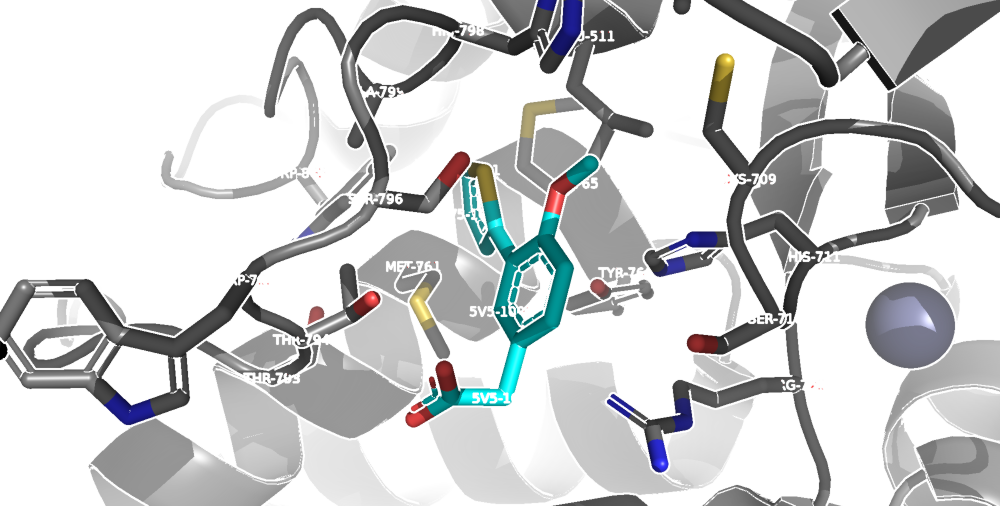
Рис. 4. Окружение лиганда 5V5.
Учитывая большое растояние между 5V5 и каталитическим центром, будет уместно предположить, что фермент игибируется путем того, что 5V5 занимает место целевого субстрата, а РНК - крупная молекула и для ее блокировки не обязательно находиться у каталитического центра.